

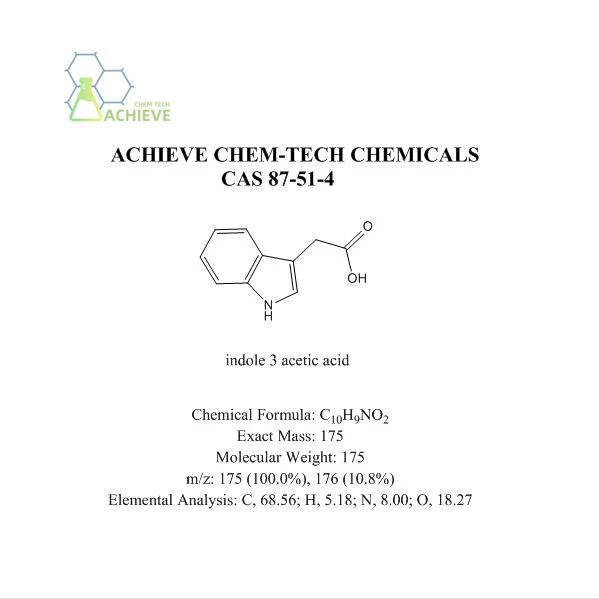


インドール3酢酸(IAA)、indoleAcity酸とも呼ばれるものは、化学式C10H9NO2および8CAS 7 - 51-4、白い結晶粉末、エタノール、アセトン、エーテルに溶け、クロロフォームにわずかに溶け、水に溶けやすい植物オーキシンです。植物成長刺激装置および分析試薬として使用されます。インドル酢酸は、拡張された若い葉と頂端分裂組織で合成され、師部の長距離輸送を通じて上から下まで蓄積されます。ルートはオーキシンを生成し、下から上に輸送することもできます。植物のオーキシンは、一連の中間製品を通じてトリプトファンによって形成されます。

|
化学式 |
C10H9NO2 |
|
正確な質量 |
175 |
|
分子量 |
175 |
|
m/z |
175 (100.0%), 176 (10.8%) |
|
元素分析 |
C, 68.56; H, 5.18; N, 8.00; O, 18.27 |
|
|
|


インドール-3-酢酸(IAA)は、初期の発見された天然植物成長ホルモンとして、その分子構造におけるインドール環と酢酸側鎖によるユニークな生物学的活性を備えています。 1934年の植物からの隔離と浄化以来、IAAは農業、園芸、バイオテクノロジー、および基礎研究分野における広範な応用価値を実証してきました。
1。細胞分裂と伸長の双方向調節
IAA promotes cell division by regulating the expression of cyclin genes, while inducing cell elongation by acidifying the cell wall and activating expansin protein. In the meristematic tissue of the stem tip, low concentrations of IAA (0.01-1 μ M) promote longitudinal cell elongation, while high concentrations (>10μm)エチレン合成を誘導することにより、根細胞の伸長を阻害します。この濃度依存効果は、トウモロコシ胚鞘の伸長実験で有意でした:0.1μmIAAは胚鞘の伸長を40%増加させ、10μM処理により伸長阻害が生じました。


2。臓器構造と形態形成
ルート開発:インドール3酢酸(IAA)PINタンパク質の極性局在を調節し、根原始の形成を促進することにより、根の分裂組織勾配を確立します。シロイヌナズナの変異体研究では、PIN1欠乏によりIAAの分布が混乱し、根毛量が60%減少しました。
最大の利点:STEM先端で生成されたIAAは、極性輸送を介した横方向の芽の発芽を阻害し、IAA輸送阻害剤(NPAなど)の外因性塗布は、ジャガイモの横芽の数を3〜5回増やすことができます。
花と果物の発達:IAAはトマトの副甲状腺症を誘導し、3000 mg/L IAA溶液に花を浸すことで、種のない果物の収量が200%増加します。リンゴの果物の設定期間中に20 mg/l IAAを噴霧すると、果物の設定率が35%増加する可能性があります。
3。環境適応対応
光類:OAT胚鞘のバックライト側のIAAの蓄積率は、バックライト側よりも30%高速であり、細胞伸長率の差を引き起こします。
地政学性:トウモロコシ根のキャップ柱細胞におけるIAAの非対称分布は、より低い細胞の伸長を阻害し、上部細胞の伸長を促進し、根の陰謀を引き起こします。
逆境反応:干ばつストレスの下で、小麦の根のIAA含有量は2.3倍増加し、根の成長を促進することで吸水能力を高めました。

植物組織培養の重要な成分

1。カルス組織の誘導
タバコの葉葉細胞培養では、0.1〜1〜1 mg/L IAAをMS培地に追加すると、カルス誘導率が12%から85%に増加する可能性があります。 IAAとシトカイニン(6-Baなど)の比率は、分化の方向を決定します。高いIAA/低6-Ba(10:1)は根形成を促進し、低IAA/高6-BA(1:10)は芽の分化を誘導します。
2。体性胚形成
ニンジン懸濁細胞培養では、0.5 mg/L IAAと2 mg/L 2,4-Dの組み合わせにより、胚発生の頻度を40%増加させることができます。 IAAは、LEC1やFUS3などの胚発生に関与する重要な遺伝子の発現を調節し、体性胚発生のプロセスを開始します。
3。遺伝的変換システムの最適化
Agrobacteriumを介した綿の遺伝的変換では、0.01 mg/L IAAを前培養媒体に追加すると、形質転換効率が25%増加する可能性があります。 IAAは細胞分裂活動を維持し、アグロバクテリウム感染の窓期間を延長し、褐変現象を減らします。
1。効率的なルートテクノロジー
ハードブランチカッティング:ブドウの硬い枝は500 mg/L IAAの急速浸漬で処理され、ルート化速度は92%に達し、これはコントロールグループより58%高かった。
根を根を張るのが難しい:赤い松の柔らかい枝は24時間1000 mg/L IAAに浸され、ルート化速度は12%から67%に増加しました。
複合製剤の開発:IAAと殺菌剤(1:10)の混合物の苗木を治療すると、根数が40%増加し、フザリウムのしおれを予防および制御するのに85%の効果が得られました。
2。果物の設定と品質管理
種なし果物の生産:イチゴのピーク開花期間中に20 mg/L IAAを噴霧すると、種なし果物の割合が70%増加し、個々の果物の重量が15%増加します。


果物の均一性:柑橘類の若い果物段階で10 mg/L IAAを噴霧すると、果実形状指数の標準偏差が0.2減少し、市販の果物率が25%増加しました。
砂糖の蓄積:砂糖ビート塊茎の膨潤期間中に5 mg/L IAAを塗布すると、糖含有量が1.8パーセントポイント増加し、収穫量が12%増加しました。
3。逆境栽培管理
生理食塩水アルカリの土地の改善:IAAとフミン酸の組み合わせで処理されたコーン種子は、発芽率が40%増加し、苗の乾燥重量が0.3%NaClストレスの下で25%増加しました。
低温の苗木栽培:苗の段階でキュウリの苗に5 mg/L IAAを噴霧すると、生存率が5度で35%増加し、電解質漏れ率が22%減少しました。
1。輸送ルートの分析
放射性標識を使用して植物のIAAの移動経路を追跡することにより、極性輸送の「CO輸送モデル」が明らかになりました。IAAとH⁺が同じ方向に輸送され、輸送を駆動するために膜電位勾配が確立されました。
2。信号形質導入に関する研究
インドール3酢酸(IAA)アキシン受容体TIR1/AFBとAUX/IAAタンパク質の間の相互作用メカニズムを解明するためのモデル分子として使用されます。酵母の2つのハイブリッド実験により、10 nm IAAがTir1-aux/IAA複合体の形成を誘導し、ARF転写因子を活性化できることが示されました。
3。代謝経路の解明
LC - MS分析と組み合わせた同位体トレース技術は、植物のIAAの主要な代謝経路を特定しました。70%はインドール-3-酢酸アスパラギン酸複合体の形で保存され、20%はIAAオキシダーゼによって酸化されたインドール酢酸に分解されます。

産業とバイオテクノロジーの拡張アプリケーション

1。微生物工学生産
組換えエセリチア大腸菌は、トリプトファンモノオキシゲナーゼ(IAAM)およびインドール-3-アルデヒドデヒドロゲナーゼ(IAAH)を発現し、発酵ブロスで1.2 g/LのIAA産生をもたらします。
2。生物学的染料の発達
IAAは、鉄イオンと赤い複合体を形成します。これは、植物組織切片のオーキシン分布の顕微鏡局在化に使用でき、感度は0.1μg/g組織です。
3。環境監視指標
植物のストレスバイオマーカーとして、IAA含有量の変化は重金属汚染の程度を反映している可能性があります。CD²の下でのイネの根のIAA含有量の減少は、汚染指数(r =-0.87)と有意に負の相関があります。

の合成ルートIaa:150度、0.9〜1mpaのインドール、ホルムアルデヒド、シアン化カリウムの反応は、3インドールのアセトニトリルを生成し、水酸化カリウムの作用下で加水分解します。または、インドールとグリコール酸の反応から。 3Lステンレス鋼オートクレーブでは、270g(4.1mol)85%水酸化カリウム、351g(3mol)インドールを加えてから、ゆっくりと360g(3.3mol)70%の水酢酸水溶液を加えます。 250度に加熱し、18時間かき混ぜます。 50度以下に冷却し、500mlの水を加え、30分間100度で攪拌して、酢酸インドール-3-ポタスシウムを溶解します。 25度まで冷却し、オートクレーブ材料を水に注ぎ、3Lの総量に水を加えます。 500mlのエーテルで抽出し、水層を分離し、塩酸を20〜30度で酸性化し、インドール-3-酢酸を沈殿させます。フィルター、冷水で洗浄し、暗闇で乾燥させて、455-490gの製品を入手します。

作用の原理:インドル酢酸は、拡張された若い葉と頂端分裂組織で合成され、師部の長い-距離輸送を介して上から下まで蓄積されます。ルートはオーキシンを生成し、下から上に輸送することもできます。植物のオーキシンは、一連の中間製品を通じてトリプトファンによって形成されます。その主な経路は、インドールアセトアルデヒドを通ることです。インドールアセトアルデヒドは、トリプトファンの酸化と脱アミノ化からインドールピルビン酸、次に脱炭酸化、またはトリプトファンの酸化とトリプトファンへの脱毛から形成できます。その後、インドledehydeは酸化されてインド培養酸になります。別の可能な合成経路は、インドールアセトニトリルからインドール酢酸へのトリプトファンの変換です。植物では、IAAは他の物質と結合してその活性を失うことができます。たとえば、アスパラギン酸とIAA、イノシトールを形成してIAA、グルコースを形成してグルコシドを形成し、タンパク質を形成してIAA -タンパク質複合体を形成します。結合したインドール酢酸は通常、植物の硬化酸の50〜90%を占めています。それは植物組織のオーキシンの貯蔵形態かもしれません。それらを加水分解して、遊離室酸を生成できます。植物組織で遍在するindleAcity酸オキシダーゼは、インドル酢酸を酸化して分解することができます。
の発見プロセスインドール3酢酸(IAA):オーキシンは、最も初期の発見された植物ホルモンです。 1880年、イギリスのC.ダーウィンは、植物の光抑制を研究しているとき、甲虫性症状の一方向性照明がコールオプティルの光栄養の曲げを引き起こすことを発見しました。コールオプティルの先端を切り取るか、コールプタイルを不透明なスズ箔キャップで覆います。一方的な光で照射された場合、光陽性の曲げは発生しません。したがって、ダーウィンは、コレオプティルが一方的な光の下で下向きに移動する物質を生成し、背面の-光表面の成長速度を引き起こし、甲状腺膜の光-の向き表面が異なり、コールオプティールの曲がりを光にしました。 1910年、P。boysen-ジェンスの実験は、甲状腺剤の先端によって生成される効果を寒天プレートから下部に伝達できることを証明しました。 1914年、A。Paalの実験は、コレオプタイルの湾曲した成長が、その下部の先端によって生成された影響の不均一な分布によって引き起こされることを証明しました。 1928年、FWがオランダから行ったところで、寒天ブロックにカットオート麦葉植物の先端を置きました。しばらくしてから、甲虫類の先端を除去し、これらの寒天片を先の尖ったコールオプティルの側面に配置しました。その結果、寒天の側はより速く成長し、反対方向に曲がりました。この実験により、甲状腺腫の先端によって生成された物質が寒天に拡散し、甲状腺腫に配置された物質が甲虫性の下部に移動し、下部の成長を促進することが確認されました。その後、冬は、シースチップによって初めて生成された成長-関連の物質を分離し、この物質オーキシンと命名しました。 1931年、オランダのKoglと他の人々は、尿路から化合物を分離し、寒天に追加しました。化合物は耐酸症であることが証明されました。その後、1946年に、Koglなどは、植物組織で耐酸症、フェニル酢酸(PAA)、インドール酸酸(IBA)なども発見しました。
人気ラベル: インドール3酢酸(IAA)CAS 87-51-4、サプライヤー、メーカー、工場、卸売、購入、価格、バルク、販売